


Растение, которое переписало генетику каннабиса и осталось в тени
Если доводилось выращивать автоцветущий сорт — а таких гроверов уже миллионы — значит, работа с Cannabis ruderalis уже была частью практики. Просто об этом редко задумываются. Это растение не фигурирует в названиях, не имеет «репутации» на рынке и почти не обсуждается на уровне потребителя. При этом его генетика встроена в огромное количество современных сортов. Это результат целенаправленной селекции, в рамках которой один из самых необычных признаков в биологии растений был перенесен из дикой формы в коммерческое выращивание.
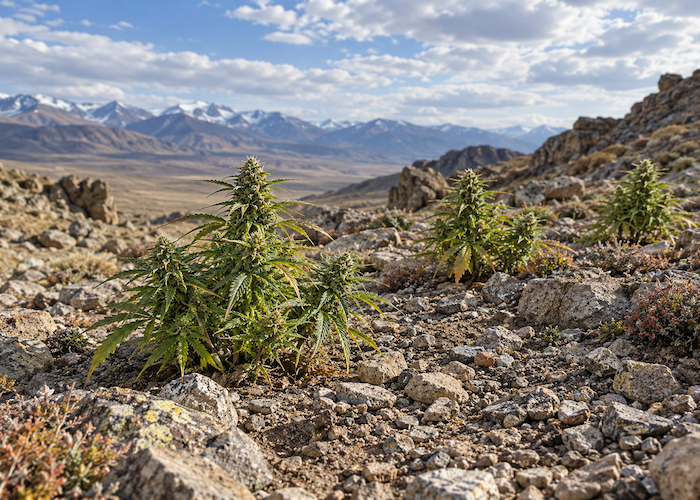
Небольшое, жесткое и приспособленное к выживанию: биология Cannabis ruderalis
Cannabis ruderalis не формировался под требования человека. Это растение среды с коротким сезоном, холодом и нарушенной почвой. Его высота редко превышает шестьдесят сантиметров, ветвление слабое, смолистость умеренная. Оно растет вдоль дорог, на берегах рек, по краям полей — в тех условиях, которые ботаники обозначают как rudus, «разрушенная почва». Это не растение для максимальной продуктивности. Это растение, рассчитанное на стабильное завершение жизненного цикла в сложных условиях.
Главное отличие рудералиса — не во внешнем виде, а в логике развития. «Сатива» и «индика» ориентируются на фотопериод: сокращение светового дня запускает цветение. Рудералис работает иначе. Через три–пять недель после прорастания он переходит к цветению независимо от освещения (McPartland, 2018; Small и Cronquist, 1976).
С точки зрения экологии это очевидное преимущество. В условиях короткого и нестабильного сезона ожидание сигнала от длины дня может привести к тому, что растение не успеет завершить цикл. Рудералис решает эту проблему, используя внутренний «таймер». Автоцветение — это не случайная особенность, а адаптивный механизм.
1924 год: Янишевский и формальное описание
Хотя растение существовало задолго до научного описания, его систематизация произошла в 1924 году. Советский ботаник Д.Е. Янишевский, изучая дикорастущие популяции в районе Волги, выделил их по трем признакам: малый размер, раннее цветение и склонность к осыпанию семян (Russo, 2007).
Последний признак особенно важен. В сельском хозяйстве он обычно устраняется, так как усложняет сбор урожая. Его наличие говорит о том, что растение либо никогда не подвергалось селекции, либо вернулось к дикому состоянию после выхода из культуры.
Таксономический статус рудералиса до сих пор обсуждается. Одни исследователи считают его отдельным видом, другие — подвидом Cannabis sativa или дикой формой. Модель Small и Cronquist (1976) объединяет все формы в один вид с внутренними различиями. Альтернативные подходы выделяют три вида. Единого мнения нет (Hillig, 2005).
Но вне зависимости от классификации, факт остается: рудералис — это генетически отличающаяся популяция с уникальным признаком, который сформировался в специфических условиях среды. Этот признак существовал задолго до того, как селекционеры начали его использовать. И именно он стал одним из ключевых факторов, изменивших современный каннабис.
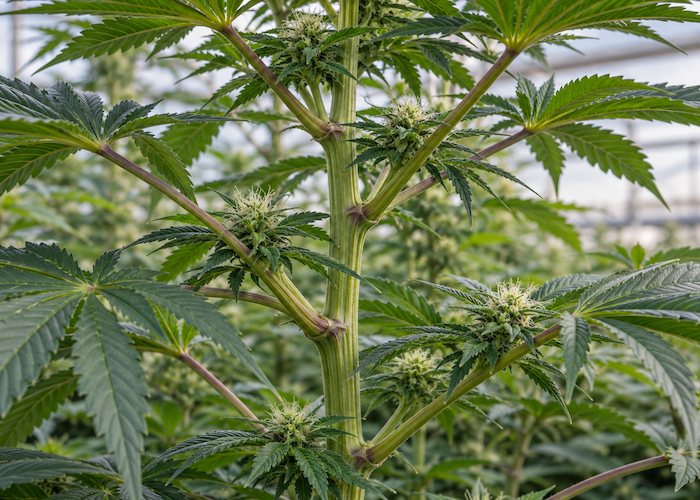
Что дало автоцветение селекционерам и чего стоило его внедрение
Практическая ценность автоцветущей генетики очевидна. При работе с фотопериодными сортами в индоре требуется строгий контроль освещения: длительная вегетация при 18 часах света и затем переход на 12 часов для запуска цветения. Это требует оборудования, точного графика и значительных энергозатрат. Растение, которое зацветает самостоятельно, устраняет эту необходимость. В аутдоре, особенно в северных широтах с коротким летом, автоцветы стали еще более востребованными — они позволяют получить урожай там, где фотопериодные формы просто не успевают завершить цикл до похолодания.
Сам признак был ценным. Сложность заключалась в другом: как перенести автоцветение в коммерческие сорта, не унаследовав при этом слабую смолистость, низкий уровень ТГК и компактность рудералиса.
Решение — интрогрессия. Селекционеры скрещивали рудералис с коммерческими гибридами, получая потомство с частичным наследием обеих линий. Затем проводились многократные обратные скрещивания с коммерческим родителем. На каждом этапе отбирались растения, сохраняющие автоцветение, но постепенно теряющие нежелательные признаки рудералиса. Через несколько поколений получался результат: растение, по морфологии и химии близкое к коммерческому сорту, но с автоцветущим механизмом.
Этот процесс имеет конкретную генетическую основу. Признак автоцветения связан с количественными локусами признака (QTL) — определенными участками хромосом, контролирующими переход к цветению (Family и соавт., 2022). Это означает, что автоцветение — не «размазанное» свойство всего генома, а локализованный, переносимый и отслеживаемый генетический элемент. По сути, селекционеры работали с точечным переносом признака, используя доступные инструменты — отбор и время.
Генетические последствия: как рудералис изменил систему категорий
На этом этапе рудералис перестает быть просто интересной особенностью селекции и становится ключевым элементом для понимания всей системы классификации.
Еще до его внедрения модель «сатива/индика» уже имела ограничения. Она возникла как описание различных экотипов, затем стала рабочим языком селекционеров и в итоге превратилась в систему категорий на рынке. Эти категории никогда не были точной генетической системой, но они отражали реальные различия между популяциями.
Гибридизация между «сативой» и «индикой» начала размывать эти различия. Интрогрессия рудералиса добавила третий генетический источник к уже смешанным геномам. В результате сформировался рынок, где растения больше не соответствуют бинарной системе, которой их продолжают описывать.
Геномные данные это подтверждают. Анализ с использованием SNP-маркеров показал, что ярлыки «сатива» и «индика» не соответствуют четким генетическим линиям, а хемотип является более точным предиктором генетической структуры (Sawler и соавт., 2015). При анализе генома категории теряют устойчивость.
Важно, что это не случайный сбой. Это результат конкретных решений: скрещивание экотипов, отбор по коммерческим признакам без системного учета генетики и внедрение генетики третьего источника без пересмотра системы классификации. В то время как биология стала непрерывным спектром, язык остался бинарным.
Рудералис как ключ к проблеме классификации
Есть соблазн объяснить крах модели «сатива/индика» как чисто маркетинговую проблему — результат упрощения для удобства продаж и восприятия. Генетика показывает другую картину. Проблема была заложена в селекции, а не добавлена позже.
Cannabis ruderalis делает это особенно наглядным. Его генетика присутствует в тысячах коммерческих сортов. Она не отражена на ярлыках. Она не вписывается ни в одну из двух категорий, используемых рынком. При этом ее присутствие можно отследить на уровне генома — участки QTL, унаследованные от рудералиса, остаются различимыми даже после многократных обратных скрещиваний.
Это означает, что попытка описывать современный каннабис через бинарную модель опирается на систему, созданную для двух экотипов, в то время как реальные растения несут генетику трех источников, смешанную в течение десятилетий без системного учета. Ярлыки не просто оторвались от генетики. Генетика вышла за пределы того, что эти ярлыки вообще способны описать.
Понимание рудералиса — его происхождения, биологии и роли в селекции — не решает проблему классификации напрямую. Но оно показывает ее масштаб. Модель «сатива/индика» перестала работать не из-за неточностей в маркировке, а потому что генетическая реальность изменилась. И изменилась она постепенно, через последовательные селекционные решения, начиная с момента, когда в Центральной Азии сформировалось растение с уникальным механизмом цветения.
Заключение
Cannabis ruderalis вошел в науку в 1924 году благодаря наблюдениям российского ботаника. Долгое время он оставался на периферии внимания. Ситуация изменилась, когда селекционеры начали использовать его автоцветущую генетику, внедряя ее в коммерческие линии через многоступенчатую интрогрессию. В результате участки генома рудералиса стали частью современных сортов, представленных на рынке по всему миру. При этом само растение осталось вне внимания потребителя. Его имя не используется в продажах. Его вклад не очевиден.
Именно это делает его показательным. Генетика не ориентируется на категории, которые создают люди. Растение развивается в соответствии со своей биологией. Селекция отбирает полезные признаки. А система классификации пытается догнать изменения, к которым она не была готова.
Если стоит задача понять, почему современные ярлыки плохо предсказывают свойства растения — а геномные исследования это подтверждают (Sawler и соавт., 2015) — наиболее точное объяснение начинается не с маркетинга и не с терминологии. Оно начинается с рудералиса — небольшого, устойчивого растения, которое изменило структуру каннабиса, не изменив при этом язык, которым его продолжают описывать.
Источники:
- Hillig, K. W. (2005). Genetic evidence for speciation in Cannabis (Cannabaceae). Genetic Resources and Crop Evolution, 52(2), 161–180.
- Laverty, K. U., Stout, J. M., Sullivan, M. J., Shah, H., Bhatt, M., Blais, C., et al. (2019). A physical and genetic map of Cannabis sativa identifies extensive rearrangements at the THC/CBD acid synthase loci. Genome Research, 29(1), 146–156.
- Family, A., Veltri, C. A., & Bhatt, M. (2021). Quantitative trait loci mapping of the autoflowering trait in Cannabis sativa. Genetics, 219(2).
- Schwabe, A.L., McGlaughlin, M.E. (2019). Genetic tools weed out misconceptions of strain reliability in Cannabis sativa: implications for a budding industry. J Cannabis Res 1, 3.
- Small, E. (2015). Evolution and classification of Cannabis sativa (marijuana, hemp) in relation to human utilization. The Botanical Review, 81(3), 189–294.
- Sawler, J., Stout, J. M., Gardner, K. M., Hudson, D., Vidmar, J., Butler, L., et al. (2015). The genetic structure of marijuana and hemp. PLOS ONE, 10(8), e0133292.